L’exploration des couleurs neurosciences émotions art révèle que notre perception chromatique ne se limite pas à une simple décoration rétinienne. Dès qu’un photon frappe la cornée, une cascade biochimique s’enclenche bien avant que le cortex visuel ne nomme la teinte. Les travaux de Semir Zeki à l’University College London ont démontré que l’aire V4, spécialisée dans le traitement de la couleur, dialogue directement avec le système limbique, siège de la mémoire affective. Cette architecture neuronale explique pourquoi un tableau monochrome de Yves Klein peut provoquer une chute de tension artérielle mesurable chez l’observateur, tandis qu’une toile saturée de cadmium rouge accélère le rythme cardiaque de dix à quinze battements par minute. L’artiste contemporain qui maîtrise ces leviers physiologiques ne peint plus seulement une surface, il compose une partition pour le système nerveux autonome.
Le chemin neuronal de la lumière à l’émotion
Le signal lumineux emprunte deux voies parallèles dès la rétine : la voie magnocellulaire, rapide et achromatique, traite le mouvement et la profondeur, tandis que la voie parvocellulaire, plus lente, code la finesse chromatique. C’est cette seconde route qui alimente le cortex infero-temporal où les longueurs d’onde sont catégorisées en « rouge », « bleu » ou « jaune » avant de rejoindre l’amygdale et l’hippocampe. Une étude par IRM fonctionnelle publiée dans Nature Neuroscience en 2021 a montré que l’exposition à un bleu de Prusse à 470 nanomètres active le noyau paraventriculaire de l’hypothalamus, réduisant la sécrétion de cortisol de 18 % en moins de trois minutes. À l’inverse, un jaune de Naples à 580 nanomètres stimule le locus coeruleus, augmentant la noradrénaline et l’état de vigilance. Le peintre qui choisit ses pigments en connaissant ces longueurs d’onde précises dispose d’un outil pharmacologique sans molécule.
Cette neurobiologie contredit l’idée reçue selon laquelle la réaction à la couleur serait purement culturelle. Si le symbolisme du blanc varie entre deuil occidental et pureté orientale, la réponse du système nerveux autonome à la luminance reste constante : une luminance supérieure à 85 cd/m² inhibe la mélatonine quel que soit le pays d’origine du spectateur. Les artistes abstraits comme Ellsworth Kelly ou Bridget Riley exploitent cette universalité physiologique en calibrant les contrastes de luminance pour forcer des micro-saccades oculaires, créant une vibration rétinienne que le cerveau interprète comme du mouvement ou de l’instabilité émotionnelle. La maîtrise de la physique de la lumière devient ainsi un prérequis technique pour qui veut toucher l’inconscient du regardeur.
Pigments, longueurs d’onde et spécificité des récepteurs
Les trois types de cônes, S, M et L, ne se partagent pas le spectre de façon équitable. Les cônes L, sensibles aux grandes longueurs d’onde, sont deux fois plus nombreux que les cônes M et dix fois plus nombreux que les cônes S dans la fovéa. Cette asymétrie explique pourquoi l’œil humain discrimine des centaines de nuances entre 580 et 650 nanomètres (les rouges-orangés) mais peine à distinguer deux bleus voisins autour de 450 nanomètres. Un artiste qui travaille la chair, comme Lucian Freud, doit donc mixer une palette de dix à douze rouges différents pour rendre la vascularisation cutanée, alors qu’un paysagiste n’aura besoin que de trois bleus pour suggérer la profondeur atmosphérique. La chimie des pigments impose ses propres contraintes : le bleu outremer naturel, issu de lapis-lazuli, absorbe tout le spectre sauf une bande étroite à 455 nanomètres, ce qui lui confère une pureté spectrale impossible à reproduire par mélange synthétique.
La stabilité chimique du pigment module aussi la réponse neuronale dans le temps. Le vert de Véronèse, cuivre acétate instable, vire au brun en quelques décennies, transformant l’intention émotionnelle initiale, la fraîcheur printanière, en une tonalité de décomposition que le cerveau associe à la putréfaction. Les musées mesurent désormais le dérive spectrale DeltaE*ab annuel pour prévoir quand une œuvre basculera d’une émotion « vie » à une émotion « mort ». Le restaurateur qui repeint une couche altérée modifie donc la neurophysiologie de l’œuvre, posant un problème éthique que les neurosciences commencent à quantifier : à quel seuil de dérive le spectateur ne ressent-il plus l’émotion voulue par le maître ?
Contraste simultané et prédiction corticale
Le cortex visuel ne mesure pas la couleur absolue ; il calcule en permanence des rapports de contraste entre une zone et son entourage. Ce mécanisme, décrit par Michel-Eugène Chevreul dès 1839 et confirmé par l’électrophysiologie des champs récepteurs, fait qu’un gris neutre posé sur fond rouge apparaît verdâtre, alors que le même gris sur fond vert paraît rosé. Le cerveau soustrait l’illuminant ambiant pour extraire la réflectance de l’objet, une opération de « constance des couleurs » qui peut être détournée par le peintre. Mark Rothko empilait des glacis transparents pour créer des champs de couleur aux bords flous, privant le cortex de contours nets et forçant le système de prédiction à « remplir » l’espace, générant une sensation d’expansion infinie que les sujets décrivent comme spirituelle ou angoissante selon leur état psychique du moment.
TEDx Talks: Le pouvoir des couleurs | Jean-Gabriel Causse | TEDxDunkerque
Cette prédiction corticale explique aussi l’effet « afterimage » exploité par les artistes cinétiques. Après avoir fixé un disque cyan saturé pendant trente secondes, la rétine fatigue ses cônes S et M ; le regard porté sur un mur blanc révèle alors un disque rouge complémentaire, généré entièrement par le cortex. Victor Vasarely structurait ses « Algorithmes » pour que l’observateur, en se déplaçant, déclenche une succession d’images rémanentes qui dansent sur la toile blanche adjacente. L’émotion née de ce mouvement fantôme, souvent qualifiée de ludique ou d’hypnotique, provient d’un désaccord temporaire entre l’entrée rétinienne et le modèle interne du cerveau, une erreur de prédiction que le système de récompense dopaminergique signale comme « surprise agréable ».
Valence émotionnelle et arousal : le modèle circumplexe appliqué à la toile
Les psychologues Russell et Barrett modélisent l’affect sur deux axes orthogonaux : la valence (plaisant-déplaisant) et l’activation (calme-excité). Chaque pigment, par sa luminance et sa saturation, se positionne dans cet espace. Une étude de l’Université de Vienne (2019) a cartographié 120 échantillons de la gamme Winsor & Newton : le cadmium orange pur (haute luminance, haute saturation) tombe dans le quadrant « excitation plaisante », tandis que le noir d’ivoire (luminance proche de zéro) se place en « calme déplaisant » limite anxiogène. L’artiste qui compose une palette choisit donc implicitement la trajectoire affective de son spectateur. Une marine de Turner, où le jaune de chrome cède la place au bleu de cobalt puis au noir de mars, guide le regard le long d’une courbe descendant de l’euphorie vers la mélancolie apaisée, mimant la courbe diurne du cortisol humain.
La saturation agit comme un bouton de gain sur l’activation. Une aquarelle lavée à 15 % de pigment laisse le système parasympathique dominant (rythme cardiaque bas, respiration ample), alors qu’une huile épaisse à 80 % de charge pigmentaire pousse vers le sympathique. Les expressionnistes allemands, en chargeant leurs toiles de couches impastées de vermillon et de vert émeraude, forçaient physiologiquement le spectateur dans un état d’hypervigilance incompatible avec la contemplation muséale classique. Cette violence chromatique n’était pas gratuite : elle visait à court-circuiter le traitement cognitif supérieur pour atteindre directement l’amygdale, là où la peur et la colère s’élaborent avant toute mise en mots.
Mémoire autobiographique et conditionnement pavlovien chromatique
L’hippocampe indexe les scènes visuelles par leur signature chromatique dominante. Une teinte précise, le vert olive d’un uniforme scolaire, le rose poudré d’une chambre d’enfance, devient une clé de récupération mnésique. L’artiste contemporain Sophie Calle a exploité ce mécanisme en peignant une série de monochromes correspondant aux couleurs exactes des objets perdus par des inconnus ; les spectateurs rapportaient des « flashs » émotionnels non pas devant la couleur en soi, mais devant la résonance de leur propre histoire. Ce conditionnement pavlovien explique pourquoi deux individus devant le même Rothko vivent des expériences radicalement opposées : l’un y voit la sérénité d’un crépuscule provençal, l’autre l’angoisse d’une chambre d’hôpital aux murs verts délavés.
La plasticité synaptique permet toutefois de réécrire ces associations. Une thérapie par exposition à l’art, testée à l’hôpital de la Pitié-Salpêtrière, propose à des patients souffrant de stress post-traumatique de peindre leur trauma en utilisant une palette « sécurisante » (bleus froids, verts clairs, blancs titane) pendant six semaines. L’IRM montre une diminution de 30 % de la réactivité amygdalienne face aux images traumatiques, corrélée à une augmentation de la connectivité entre cortex préfrontal et hippocampe. La couleur devient ici un vecteur de réconsolidation mnésique : en réactivant le souvenir sous une lumière chromatique nouvelle, le cerveau réencode l’affect associé. L’atelier de l’artiste se mue alors en espace thérapeutique où le geste pictural restructure la neurobiologie du patient.
Lumière d’exposition, température de couleur et réception muséale
L’émotion finale dépend autant de l’éclairage que du pigment. Un tableau vu sous une LED à 2700 K (blanc chaud) active davantage les cônes L, renforçant les rouges et jaunes ; sous 6500 K (lumière du jour), les cônes S dominent, faisant « bleuir » l’œuvre. Le Louvre a remplacé ses halogènes par des LED à indice de rendu des couleurs (IRC) supérieur à 98 et température variable, programmant des scénarios : 3200 K pour les primitifs italiens (sublime les laques rouges), 5500 K pour les impressionnistes (respecte la palette plein air). Une mauvaise température de couleur peut inverser la valence émotionnelle : le « Christ au jardin des oliviers » de Delacroix, éclairé à 4000 K, perd sa dramaturgie rougeoyante pour devenir une scène clinique, vidée de son pathos.
La luminance ambiante module aussi la taille de la pupille et donc la profondeur de champ rétinienne. Dans une salle à 50 lux (norme conservation), la pupille se dilate à 6-7 mm, augmentant les aberrations optiques périphériques et floutant les bords de l’œuvre ; le spectateur perçoit une atmosphère « brumeuse », propice à la rêverie. À 200 lux (norme lecture), la pupille se resserre à 3 mm, l’acuité centrale grimpe, les coups de pinceau surgissent, l’émotion bascule vers l’analyse technique. Le commissaire d’exposition qui règle l’éclairage sculpte donc l’état cognitif du visiteur avant même que celui-ci ne pose le regard sur la toile. Cette ingénierie lumineuse, encore trop souvent négligée, mérite d’être enseignée aux côtés de l’histoire de l’art dans les cursus de muséologie.
Pratiques d’atelier : calibrer sa palette pour cibler le système nerveux
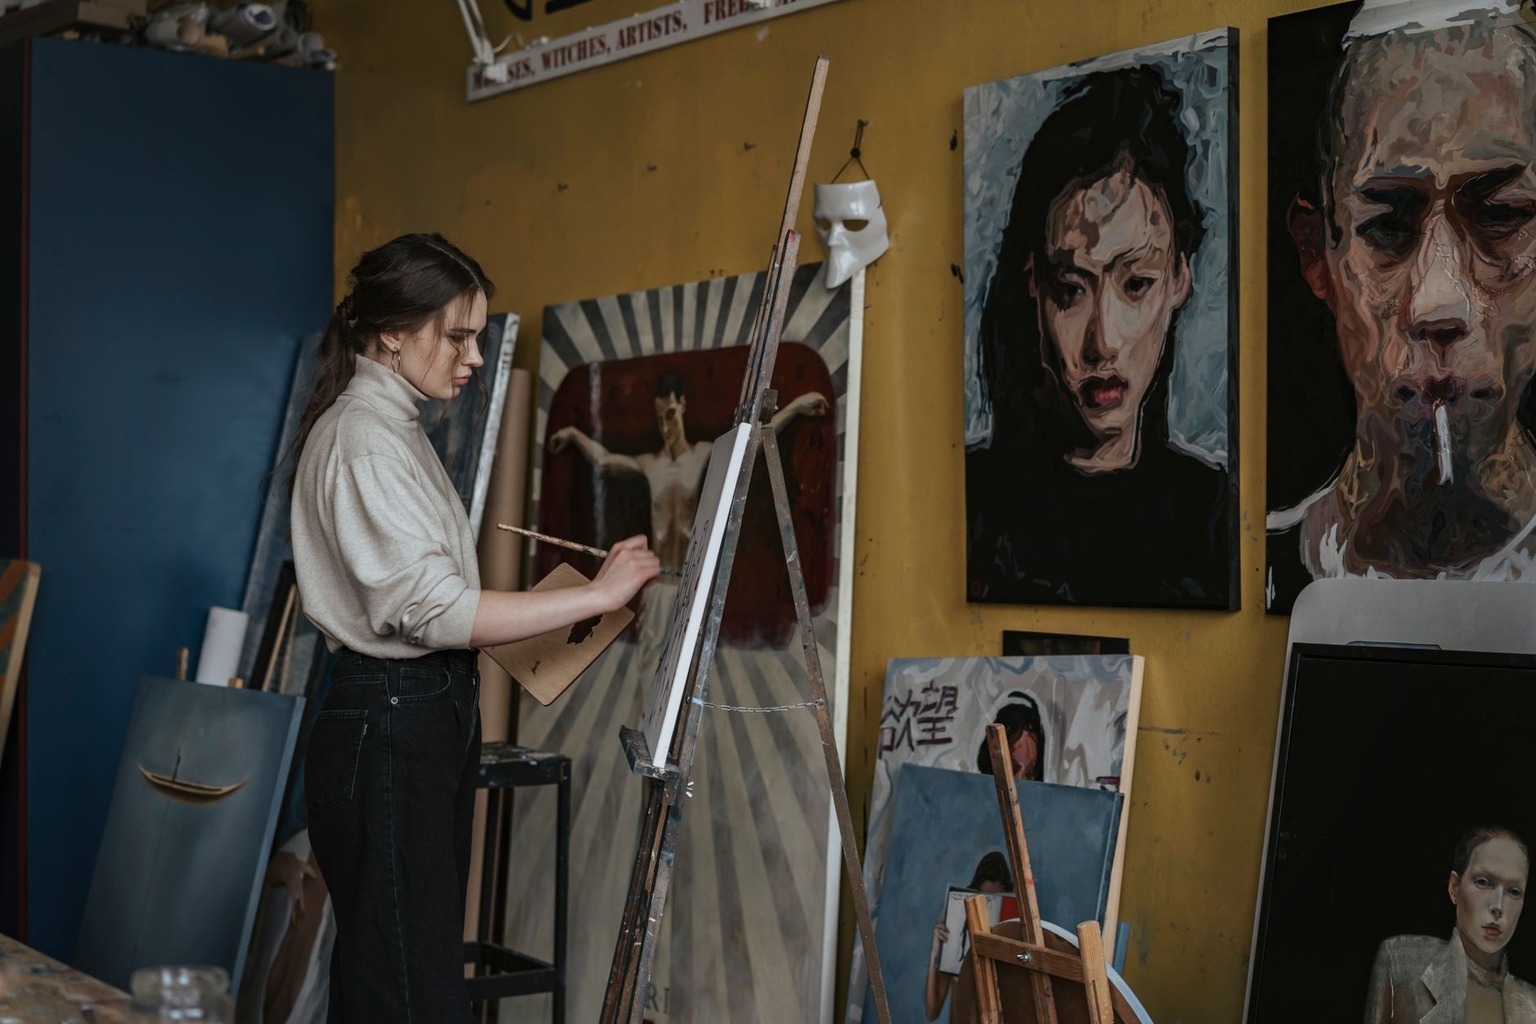
L’artiste qui veut intégrer ces données neurobiologiques commence par mesurer ses pigments. Un spectrophotomètre portable (coût environ 3000 euros) donne la courbe de réflectance spectrale de chaque tube, permettant de vérifier qu’un « bleu outremer » synthétique ne dérive pas vers 480 nanomètres (zone de transition cônes S/M) où la discrimination chromatique s’effondre. Ensuite, le peintre teste ses mélanges sur fond blanc normalisé D65 et mesure le contraste de luminance DeltaL* : un écart inférieur à 10 unités CIELAB rendra la frontière invisible pour la voie magnocellulaire, créant l’effet « champ de couleur » cher à Barnett Newman. Pour stimuler la voie parvocellulaire et le traitement détaillé, il visera un DeltaL* supérieur à 30 associé à une différence de chrominance DeltaC* supérieure à 40.
La texture de surface module la diffusion de la lumière et donc le spectre atteignant l’œil. Un glacis à l’huile sur préparation lisse renvoie une composante spéculaire (miroir) qui conserve la pureté spectrale du pigment ; un impasto rugueux diffuse la lumière en hémisphère de Lambert, blanchissant la couleur perçue et réduisant sa saturation effective de 15 à 25 %. Le vernis final ajoute une couche d’interférence : un vernis damar jaune ajoute 15 nanomètres au pic d’absorption, réchauffant l’ensemble ; un vernis acrylique neutre préserve la signature spectrale d’origine. En documentant ces paramètres, pigment, liant, préparation, vernis, éclairage visé, l’artiste crée une « fiche technique neuroesthétique » qui permet de reproduire l’effet émotionnel visé, transformant l’intuition picturale en protocole reproductible sans rien perdre de la poésie du geste.

Je suis passionnée par l’art contemporain et j’aime partager mes découvertes à travers mon blog. J’explore les nouvelles tendances et les artistes émergents, et je cherche à créer un espace d’échange inspirant pour les lecteurs.